DNAに「分子カラビナ」を掛ける ―SMC複合体がリング構造にDNAを通した状態のを直接可視化に成功―
金沢大学ナノ生命科学研究所(WPI-NanoLSI)の梅田健一准教授、古寺哲幸教授、情報・システム研究機構 国立遺伝学研究所の黒川由美子助教、村山泰斗教授らの共同研究グループは、DNAの折りたたみに関わるSmc5/6複合体の分子構造と動きを高速原子間力顕微鏡(高速AFM、※1)を用いて観察し、カラビナのようなリング状のSmc5/6がロープのようなDNAに掛かるように結合することをリアルタイムで直接可視化することに成功しました。
生命の設計図であるゲノムDNAは、細胞よりもはるかに長大な分子であり、細胞の中では染色体として折りたたまれています。SMC複合体(※2)はリング状のタンパク質複合体で、リング内にDNAを通して束ねることで染色体の構造を形成すると考えられています。しかし、SMC複合体がリング構造を利用してDNAにどのように結合し、操作するのかについては、これまで直接観察することが困難でした。
そこで本研究グループは、細胞内で働くタンパク質分子の構造と動きを直接可視化できる高速AFMを用いて、Smc5/6複合体とDNAとの相互作用をリアルタイムで解析しました。その結果、Smc5/6が主要な生体エネルギー分子であるATP(※3)を利用してDNAと相互作用し、最終的にDNAがリング内を通った状態で結合する「トポロジカル結合」(※4)を形成することを明らかにしました。これは、Smc5/6がDNAに「分子カラビナ」を掛けたような結合状態です。さらに、Smc5/6がDNAのねじれた構造を安定化することで、DNAを凝縮させることも明らかにしました。
本研究により、SMC複合体がDNAに結合し、操作する分子機構への理解が深まり、SMC複合体の働きを通じてゲノムの安定性が維持される仕組みの解明につながることが期待されます。
本研究成果は、2026年9月1日に国際学術誌『Nature Communications』のオンライン版(オープンアクセス)に掲載されました。
【研究の背景】
細胞の中では、非常に長いゲノムDNAが染色体として折りたたまれ、複製・修復・分配などの生命活動に伴って絶えず形を変えています。この染色体構造を制御する中心的な分子装置がSMC複合体です。代表的なSMC複合体として、姉妹染色分体をつなぐコヒーシンや、染色体を凝縮するコンデンシンが知られています。これらはいずれも直径約30 nmの比較的大きなリング状のタンパク質複合体で、棒状のSMCアーム部位と球状のATP分解 (ATPase) 活性 (※3)のあるヘッド部位などから構成されています。そして、ATPの結合と加水分解を利用して自身のリング構造を変化させながらDNAに結合し、DNAの折りたたみを制御すると考えられています。
Smc5/6は、第3のSMC複合体であり、DNAの損傷修復や複製に関与し、ゲノムDNAを安定に維持する上で重要な役割を果たしています。また、ヒトでは、Smc5/6がB型肝炎ウイルスに対する防御機構に関与することも知られています。こうした多様な生体機能は、Smc5/6のDNA結合活性を通じて制御されていると考えられています。これまで、生化学実験や一分子蛍光観察により、Smc5/6がDNAに結合し、DNAを凝縮する活性を持つことは示されていました。しかし、Smc5/6がリング構造をどのように利用してDNAに結合し、操作するのかを直接観察することは困難でした。そこで本研究グループは、溶液中でタンパク質の形や動きを動画として観察できる高速AFMを用いて、Smc5/6の構造変化とDNAとの相互作用をリアルタイムで直接追跡しました。
【研究成果の概要】
本研究では、出芽酵母のSmc5/6複合体を精製し、DNAへの結合反応を試験管内で再構成する実験系を構築しました。これを高速AFMで観察することにより、Smc5/6の構造変化とDNA結合の動態をリアルタイムで可視化しました。
まず、Smc5/6のみを高速AFMで観察したところ、ATPがない条件(アポ状態)では、2本のSMCアームが近接した細長いI型の構造をとっていました。一方、ATPが結合すると、SMCアームが開き、リング状のO型構造へと変化しました(図1)。
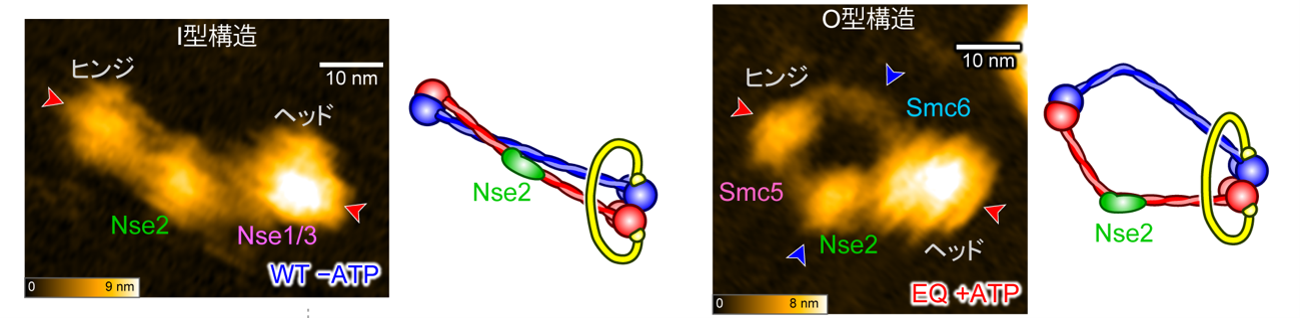
図1:(左)I型と(右)O型のSmc5/6複合体の高速AFM像と模式図。ATPがない条件ではリングが閉じて見えるI型が多く、ATP存在下ではリングが開いて見えるO型が増加する。ATP加水分解欠損EQ変異体ではO型が特に安定化した。 出典:Umeda K et al. Nat Commun (2026), DOI: 10.1038/s41467-026-77122-x. Licensed under CC BY-NC-ND 4.0
また、本研究で得られた高速AFM像と既報のクライオ電子顕微鏡による構造情報をもとに粗視化シミュレーションを行い、アポ状態のI型からATP結合状態のO型へと変化する様子を原子構造レベルでモデル化しました(図2)。
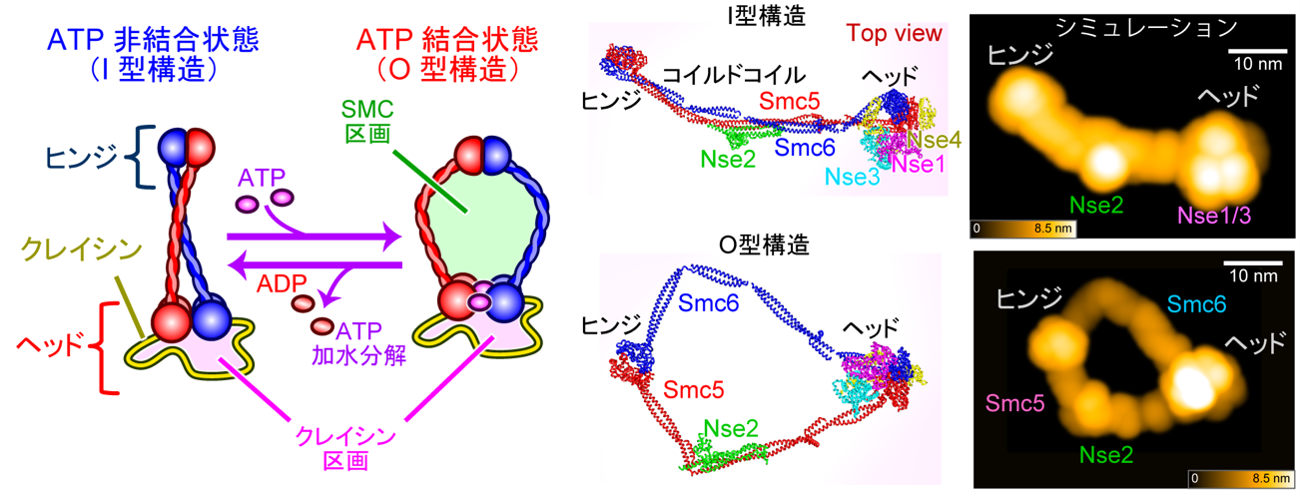
図2:(左)Smc5/6のATPaseサイクルの模式図。(右)I型とO型の分子構造およびシミュレーションにより得られた疑似AFM像。
出典:Umeda K et al. Nat Commun (2026), DOI: 10.1038/s41467-026-77122-x. Licensed under CC BY-NC-ND 4.0.
これらの結果から、Smc5/6はATPの結合と加水分解に伴って、I型とO型の間で分子構造を大きく変化させることが明らかになりました。 次に、DNAへの結合反応を再構成し、高速AFMによってSmc5/6がDNAに結合した状態を観察しました。この実験では、「“脂質二重膜ステージ」(※5)を観察基板として用いることで、DNAに結合したSmc5/6分子を選択的に観察することに成功しました。その結果、Smc5/6がDNAをリング内部に囲い込む「トポロジカル結合」の状態、すなわち「分子カラビナ」としてDNAに結合した状態を直接可視化しました。さらに、その状態を保ったままSmc5/6がDNA上を動く様子をリアルタイム動画として捉えました(図3)。
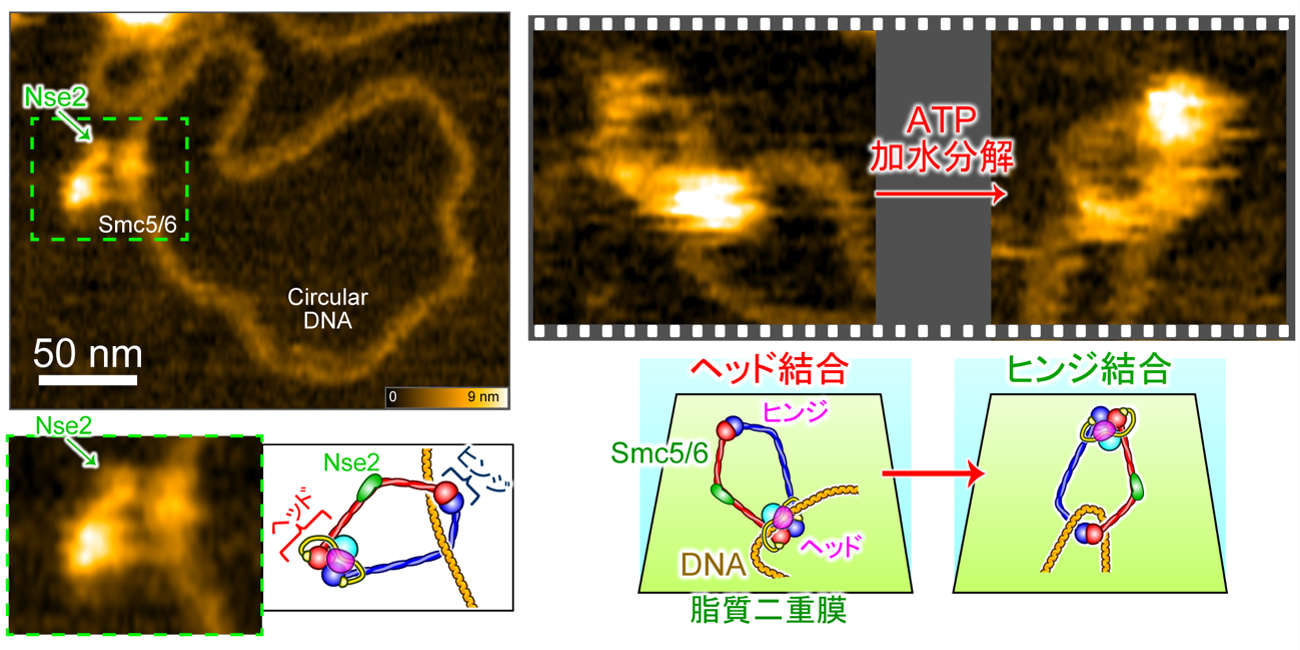
図3:(左)DNAにトポロジカル結合したSmc5/6。Smc5/6がDNAに「分子カラビナ」を掛けたような結合状態となっている。(右)ヘッド結合モード(カラビナの開閉部にDNAが捉えられている状態)およびヒンジ結合モード(カラビナの内部にDNAが収められている状態)の高速AFMイメージ。
出典:Umeda K et al. Nat Commun (2026), DOI: 10.1038/s41467-026-77122-x. Licensed under CC BY-NC-ND 4.0.
詳細な解析から、Smc5/6はまずATPase活性部位のヘッド側にあるクレイシン区画でDNAを保持し、その後、ATP加水分解に伴ってDNAをSMC区画へ移すことが示されました。Smc5/6をカラビナに、DNAをロープに例えると、ロープをまずカラビナの開閉部付近で捉え、その後、開閉部を通してリングの内側へロープを収めるような機構です。さらに、複数分子のSmc5/6が結合すると、DNAのねじれた構造が安定化され、DNAが凝縮することも観察されました(図4左)。
以上、本研究では、Smc5/6がDNAに結合した分子状態とその動態を直接可視化し、DNA結合の分子機構の一端を明らかにしました(図4右)。この知見は、Smc5/6がDNA複製や修復の過程で生じる複雑なDNA構造をどのように処理するのか、その仕組みの理解につながるものです。
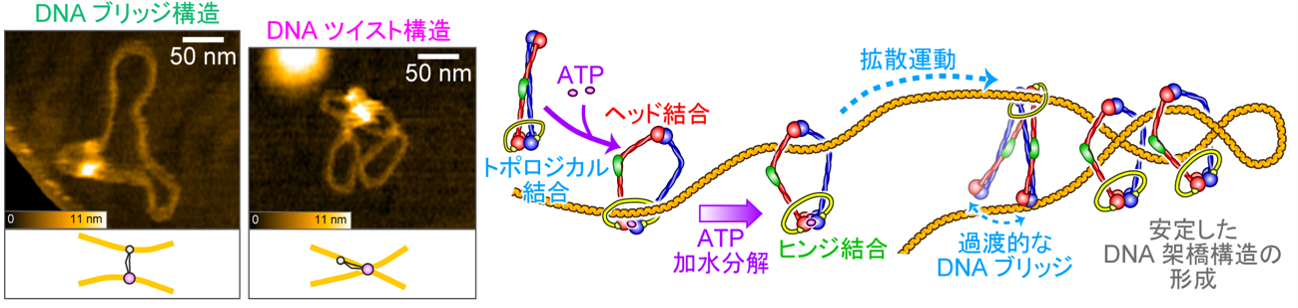
図4:(左)Smc5/6によるDNAブリッジ・ツイスト構造の高速AFM像。(右)DNAのトポロジカルな取り込み、拡散運動、DNA-DNA連結をまとめた作動モデル。
出典:Umeda K et al. Nat Commun (2026), DOI: 10.1038/s41467-026-77122-x. Licensed under CC BY-NC-ND 4.0.
【今後の展開】
本研究で確立した直接可視化実験法をさらに発展させることで、修復、複製、転写などのさまざまな染色体活動に伴って生じる複雑な動的DNA構造変化を、Smc5/6がどのように制御するのか、その分子機構の解明が期待されます。また、この可視化法をコヒーシンなど他のSMC複合体にも適用することで、それぞれの複合体が高次染色体構造を形成する分子基盤を、動的な直接観察に基づいて理解できるようになることが期待されます。
用語解説
掲載論文情報
- 論文タイトル
- Submolecular video-imaging of the Smc5/6 complex topologically bound to DNA
- 著者
- Kenichi Umeda, Yumiko Kurokawa, Noriyuki Kodera, Yasuto Murayama
- 掲載誌
- Nature Communications
- 掲載日
- 2026.09.01
- DOI
- 10.1038/s41467-026-77122-x
- URL
- https://doi.org/10.1038/s41467-026-77122-x