記憶を司るタンパク質CaMKIIの数珠つなぎを発見
金沢大学大学院新学術創成研究科ナノ生命科学専攻博士後期課程3年の鈴木大晴、金沢大学ナノ生命科学研究所(WPI-NanoLSI)/新学術創成研究機構の柴田幹大教授、京都大学大学院生命科学研究科/金沢大学ナノ生命科学研究所の炭竈享司特定講師、自然科学研究機構生理学研究所の村越秀治准教授らの共同研究グループは、記憶や学習の中心を担うタンパク質「カルシウム/カルモジュリン依存性キナーゼIIα(CaMKIIα)」が、シナプス後肥厚(PSD)(※1)に迫る高密度のもとで互いに数珠つなぎになることを、高速原子間力顕微鏡(高速AFM)(※2)を用いて明らかにしました。
CaMKIIαは、12個のサブユニットがリング状に集合した12量体として働く酵素です。脳の興奮性神経細胞にきわめて多く存在し、海馬では全タンパク質の約2%を占めます。とりわけ信号を受け取る領域であるPSDでは、1平方マイクロメートルあたり約800個のCaMKIIαがひしめいています。記憶の形成に関わる長期増強(LTP)が起こると、CaMKIIαはこのPSDにさらに集まります。しかし、その結合相手であるNMDA型グルタミン酸受容体の数はCaMKIIαの数をはるかに下回るため、受容体との結合だけではCaMKIIαがPSDに高密度で集積する仕組みを十分に説明できませんでした。
そこで本研究グループは、PSDに迫る高密度環境を再現した条件で高速AFM観察を行い、CaMKIIα同士がキナーゼドメインを介して互いに接触し、2〜10個連なった鎖状のクラスターを作ることを発見しました。さらに、カルシウム/カルモジュリン(Ca2+/CaM)が結合すると、クラスターはより大きく成長し、その引き金がキナーゼドメインの活性部位を覆っていた制御セグメントが外れることにあると突き止めました。
一方、知的障害の患者で見つかったCaMKIIαの変異体(P212L)は、活性化していない基底状態でも、野生型より大きなクラスターを作りました。適切な大きさの鎖状クラスターを保つことが、シナプスでの信号伝達に重要である可能性を示す結果です。
これらの知見は、記憶や学習の分子メカニズムの理解を深めるとともに、神経発達症(NDDs)(※3)の発症機構の解明や新たな治療法の開発にも貢献すると期待されます。
本研究成果は、2026年9月11日14時(米国東部時間)に米国科学誌『Science Advances』のオンライン版に掲載されました。
【研究の背景】
私たちの記憶や学習は、神経細胞同士のつなぎ目である「シナプス」の性質が長期間にわたって変化することによって支えられています。この変化は「シナプスの可塑性」と呼ばれ、なかでも信号の伝わりやすさが持続的に高まる「長期増強(long-term potentiation: LTP)」は、記憶形成の細胞基盤と考えられています。
LTPには、性格の異なる二つの側面があります。一つは、シナプス後部に並ぶ受容体の数が増え、同じ信号をより強く受け取れるようになる変化で、「機能的可塑性」と呼ばれます。もう一つは、シナプス後部の小さな突起である樹状突起スパインそのものが膨らみ、内部のアクチン細胞骨格が組み替わる変化で、「構造的可塑性」と呼ばれます。
このLTPに中心的な役割を果たすのが、カルシウム/カルモジュリン依存性キナーゼII(CaMKII)という酵素です。CaMKIIαは12個のサブユニットがリング状に集まった12量体として働き、各サブユニットはキナーゼドメイン、制御セグメント、リンカー、ハブドメインから構成されます(図1)。基底状態では、制御セグメントがキナーゼドメインを覆うことで酵素活性が抑えられています。神経活動によってカルシウムイオンが流入すると、カルシウム/カルモジュリン(Ca²⁺/CaM)が制御セグメントに結合し、制御セグメントがキナーゼドメインから外れることで酵素が活性化します。さらにThr286が自己リン酸化されると、カルシウム濃度が下がった後もその活性が保たれます。
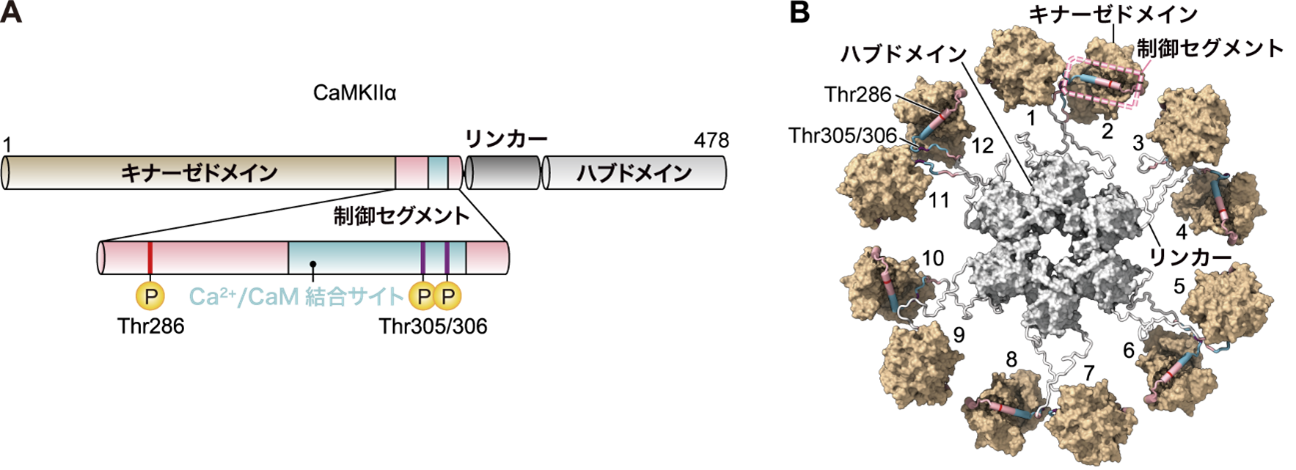
図1:CaMKIIα のドメイン構成と12量体モデル。 (A)CaMKIIαのサブユニット構成。キナーゼドメイン, 制御セグメント, リンカー, ハブドメインからなる。数字はアミノ酸の位置を示す。(B)12個のサブユニットが中央のハブ集合体を囲んでリング状に組み上がった12量体のモデル(電子顕微鏡データに基づく)。自己リン酸化(P)を受けるThr286, Thr305, Thr306の位置を示す。
近年、LTPの成立には、CaMKIIが標的タンパク質をリン酸化する酵素としての働きだけでなく、酵素活性によらない構造的な働きも重要であることが分かってきました。実際に、CaMKIIはスパインの中で集合することが報告されており、その集合体が足場としての役割をもつのではないかと考えられています。こうした集合の背景にあるのが、CaMKIIαの圧倒的な存在量です。シナプス後部の「シナプス後肥厚(PSD)」では、直径約26ナノメートルの12量体が、互いに触れ合いそうな近さで並ぶほどの密度でひしめいており、その量は細胞の形を支える骨格タンパク質、アクチンに匹敵します。
LTPが起こると、CaMKIIαはNMDA型グルタミン酸受容体のGluN2Bサブユニットの細胞内領域に結合し、シナプスにとどまります。しかし、CaMKIIαの分子数はGluN2Bの数をはるかに上回るため、受容体に直接結合できるのはごく一部にすぎません。このことから、CaMKIIα同士が自ら集合(クラスター化)することによって、高い局所濃度を保っているのではないかと考えられてきました。電子顕微鏡による観察では、虚血に似た条件下でマイクロメートルサイズの大きな凝集体が報告されており、試験管内では液液相分離を起こすことも示されています。
ただし、これほど豊富に存在するCaMKIIαが、スパインの中で実際に分子同士が結びついているのか、そうであればどのような形の集合体を作るのか、そしてそれが何のためにあるのかは、長く不明でした。この問いに答えるには、5〜500ナノメートルという「メゾスコピック(※4)」な視点での観察が必要です。タンパク質1分子の形は数ナノメートル、光学顕微鏡で捉えられるスパイン全体は数百ナノメートルから1マイクロメートルです。その中間にあたるこの範囲は、分子が集団としてどう振る舞うかが決まる領域にあたります。しかし、この領域を直接観察する手法はこれまでほとんどありませんでした。
【研究成果の概要】
本研究グループは、高速AFMを用いて、5〜500ナノメートルというメゾスコピックな領域でCaMKIIα分子同士の相互作用を観察しました。高速AFMは金沢大学が世界に先駆けて開発してきた顕微鏡技術で、溶液中で働くタンパク質1分子の姿を、そのまま動画として捉えることができます。
まず、CaMKIIαが自由に拡散できる希薄な溶液中でどのような状態にあるのかを調べました。走査中の基板(マイカ)にCaMKIIαを加え、吸着した瞬間の姿を撮影したところ、活性化していない基底状態でもCa2+/CaM結合状態でも、95%以上が単独の12量体として吸着しました(図2)。つまり、自由に拡散できる環境では、CaMKIIαは互いに手を結びません。
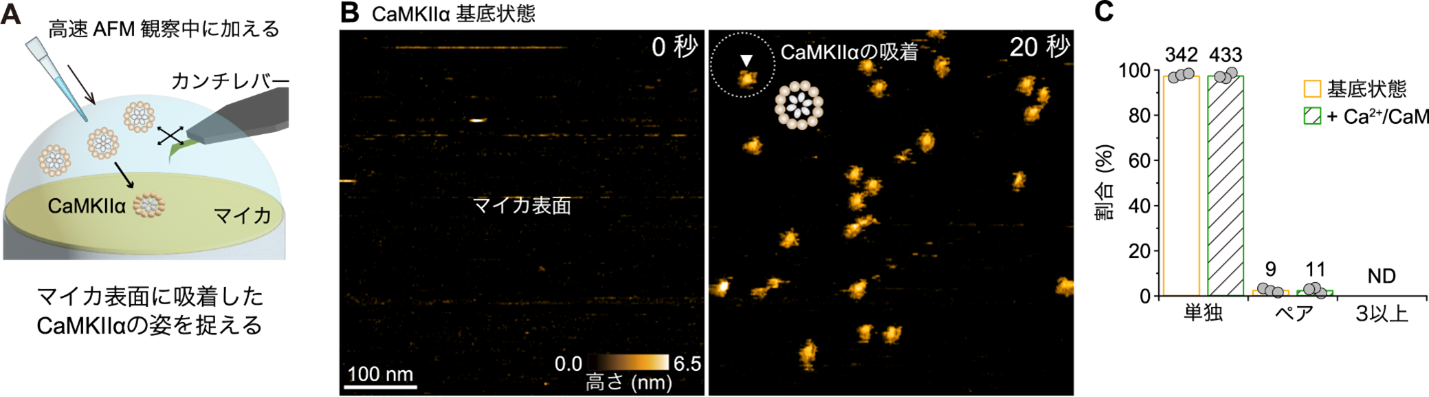
図2:希薄な溶液中のCaMKIIαは単独の12量体として存在する。 (A)高速AFM観察の模式図。(B)高速AFM観察を続けながら観察バッファーにCaMKIIαを加え、基板(マイカ)に吸着する瞬間を捉えた。(C)基板に吸着したときの12量体形態の割合。基底状態でもCa2+/CaM結合状態でも95%以上が12量体単独で基板に吸着した。原著論文では動画を見ることができる。
次に、シナプス内に近い「密度が高く、動きが制限された」状況を再現しました。基板上のCaMKIIαの数を少しずつ増やしながら500 × 500ナノメートル四方の範囲を観察すると、密度の上昇とともにCaMKIIα同士の接触が増え、一時的なペアやクラスターの形成と解離が繰り返される様子が見られました(図3A)。集合の瞬間に注目すると、まず少なくとも1個のCaMKIIαが基板上で動きを止め、そこに別のCaMKIIαが接触することが引き金となっていました(図3B)。つまり、CaMKIIαの集合には、高い密度と拡散の停止という二つの条件がそろう必要があります。基底状態では1クラスターあたりのCaMKIIαの数は2〜3個にとどまりましたが、Ca2+/CaMが結合した状態では、PSDの約30〜45%に相当する密度でクラスターが有意に大きくなりました。
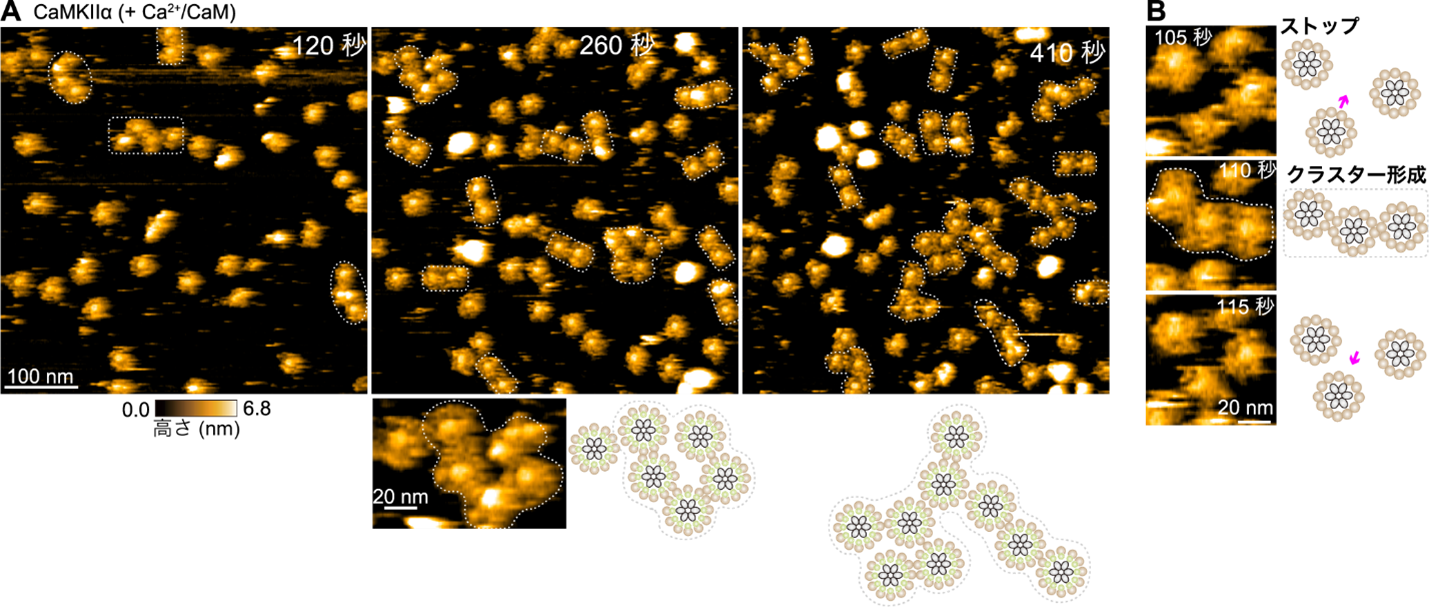
図3:密度が上がるとCaMKIIα同士が接触しクラスターができ始める。 (A)基板上のCa2+/CaM が結合したCaMKIIαの数が増えるにつれて、分子同士の接触とクラスターの形成が増えていく様子。白い点線はクラスターを示す。(B)クラスターができる瞬間の連続画像。1個の12量体が動きを止め(ストップ)、そこに別の12量体が接触することでクラスターが形成する。
さらに、基板上のCaMKIIαの密度が、PSDで報告されている値の半分ほどになるように調整し、5分置いた後に観察したところ、CaMKIIαが2〜10個つながった「鎖状クラスター」がはっきりと捉えられました(図4)。つなぎ目を詳しく解析すると、外側に張り出したキナーゼドメイン同士が接触することで、クラスターが形づくられていました。また、Ca2+/CaMが結合すると、隣り合うCaMKIIαの中心間距離は約19ナノメートルから約23ナノメートルへと広がりました。この4ナノメートルの差は、以前の研究でCaMKIIα 1分子について観察された伸長のおおよそ2倍に相当し、キナーゼドメインが放射状に伸びた構造であることを物語っています。1クラスターあたりの分子数も増え、分子同士の結びつきの強さを表す自由エネルギーの解析からも、Ca2+/CaMの結合がクラスターを安定させることが確かめられました。
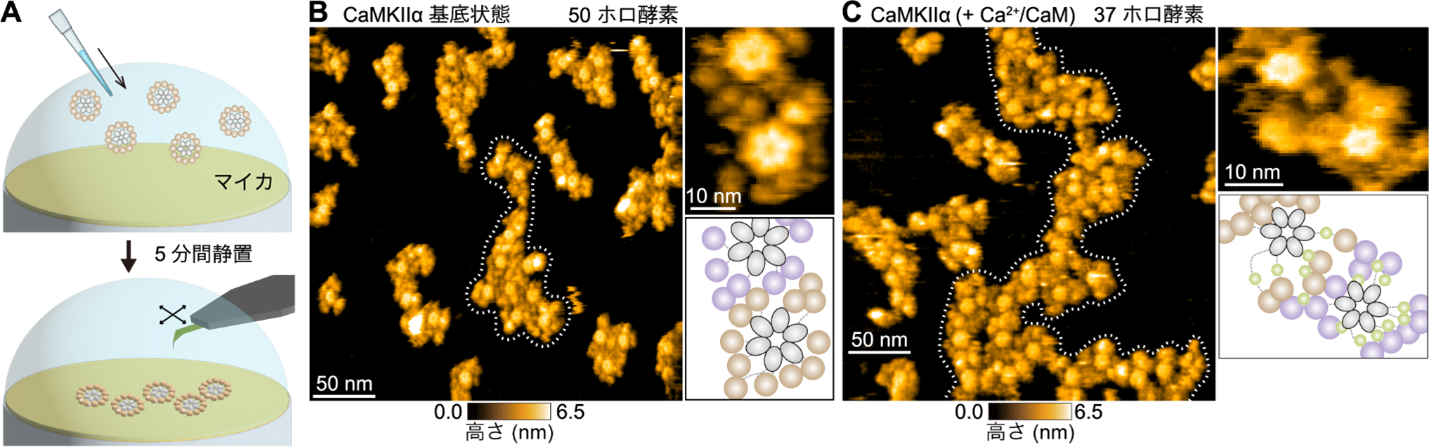
図4:CaMKIIαはキナーゼドメインを介して鎖状クラスターを作り、Ca2+/CaMの結合でクラスターが広がる。 (A)高速AFM観察の模式図。(B)基底状態、(C)Ca2+/CaM結合状態の高速AFM画像。白い点線は代表的な鎖状クラスターを示す。右は拡大画像と、対応するCaMKIIαの構造の模式図。原著論文では動画を見ることができる。
また、Thr286が自己リン酸化された状態でも、Thr286/Thr305/Thr306が自己リン酸化された状態でも、同じように大きな鎖状クラスターが観察されました。自己リン酸化が起きない変異体(T286A、T305A/T306V)を用いた実験からは、クラスターの成長を促すのが、リン酸化そのものではなく、制御セグメントがキナーゼドメインから外れることだと分かりました。これは、制御セグメントの解離により露出したキナーゼドメインの表面が、隣のCaMKIIαと結合しやすくなるためだと考えられます。ただし、その接触面は特定の場所に限られていませんでした。キナーゼドメインの結合部位(T-site)を阻害ペプチドAIPで塞いでもクラスターは形成され、CaMKIIα同士の結びつきの強さも、室温で分子が自然に揺らぐ熱運動のエネルギーと同程度(約-0.7キロカロリー/モル)にすぎません。つまり、CaMKIIαの集合は特定の強い結合面によるものではなく、キナーゼドメイン表面の弱く非特異的な相互作用が積み重なって生じていることが示唆されます。
最後に、知的障害の患者で報告されているCaMKIIαのP212L変異体を観察しました。P212は制御セグメントのやや外側に位置しており、この変異があるとキナーゼドメインと制御セグメントの結びつきが弱まると予測されています。実際、P212L変異体は、活性化していない基底状態でも野生型より有意に大きなクラスターを形成しました。制御セグメントが外れやすく、あらかじめ「伸びた」構造をとりやすいためだと考えられます。適切な大きさのクラスターを保つ仕組みが崩れることが、疾患につながる可能性を示す結果です。
これらの結果から、LTPの際にCaMKIIαがシナプスへ集積する仕組みについて、次のモデルを提唱しました(図5)。基底状態では、CaMKIIαはスパイン内を拡散するか、F-アクチンに結合し、数個からなる小さな鎖状クラスターを作っています。LTPによってカルシウムが流入するとCa2+/CaMが結合し、CaMKIIαは伸長構造をとって、PSDにあるGluN2Bの細胞内C末端領域と結合します。この複合体が「核」となり、隣り合うCaMKIIαがキナーゼドメインを介して次々に取り込まれることで、クラスターが拡大していきます。このように、CaMKIIαが単なる酵素にとどまらず、集団として振る舞う構造体となってシナプスを作り変えていく姿が、初めて目に見える形で示されました。
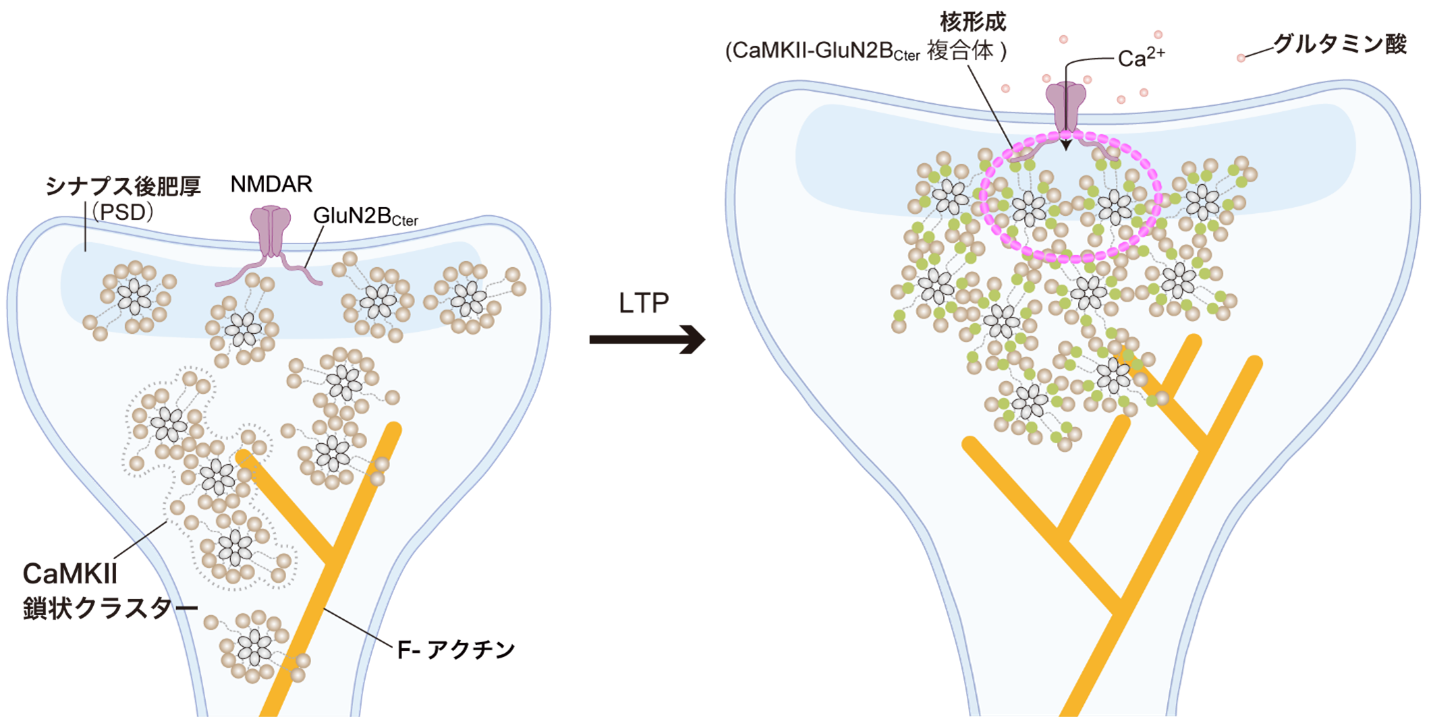
図5:高速AFM観察から提唱されたLTP時のCaMKIIα集積モデル。 基底状態では、CaMKIIαはスパイン内を拡散するか、F-アクチンに結合し、数個からなる小さな鎖状クラスターを作っている(左)。LTPによってカルシウムが流入すると、Ca2+/CaMが結合したCaMKIIαがNMDA型グルタミン酸受容体のGluN2Bと結合し、この複合体を核として周囲のCaMKIIαが次々に取り込まれ、クラスターが拡大する(右)。
【今後の展開】
本研究は、CaMKIIαが互いに直接結びついてクラスターを作る過程を、メゾスコピックな領域で初めて可視化したものです。40年以上にわたって研究されてきたCaMKIIについて、1分子の構造でも細胞内で生じる大きな凝集体でもない、その中間の姿を捉えたことになります。クラスターの大きさと、その活性化に応じた拡大が適切に制御されることは、LTPの初期に起こるシナプスの構造的可塑性を担う仕組みの一つかもしれません。
ただし、今回の観察は基板上という二次元、かつ試験管内(in vitro)の環境で行われたものであり、数百種類のタンパク質がひしめく実際のシナプスで同じことが起きているかどうかは、今後の検証を待つ必要があります。分子が基板に吸着しにくい条件を整え、神経細胞内で起きているはずの可逆的なクラスターの動きを追うことが次の課題です。
こうした研究の先には、記憶や学習がどのように分子のレベルで書き込まれるのかという問いがあります。同時に、CaMKIIαには知的障害や自閉スペクトラム症に関わる変異が数多く報告されており、クラスターの大きさという新しい物差しでそれらを調べ直すことで、神経発達症の発症機構の解明や、新たな治療法の開発にもつながる可能性があります。私たちは、金沢大学で発展させてきた高速AFMを軸に、シナプスの中で分子が集団としてどのように振る舞っているのかを、一つ一つ地道に明らかにしていきます。
用語解説
掲載論文情報
- 論文タイトル
- Scientists observe a protein involved in learning and memory forming chains (記憶を司るタンパク質CaMKIIの数珠つなぎを発見)
- 著者
- Taisei Suzuki+, Takashi Sumikama+, Keisuke Matsushima, Kodai Hasegawa, Ayumi Sumino, Kenichi Umeda, Noriyuki Kodera, Tamoghna Das, Carsten Beta, Hideji Murakoshi, and Mikihiro Shibata (鈴木大晴+、炭竈享司+、松島啓介、長谷川航大、角野歩、梅田健一、古寺哲幸、タモグナ・ダス、カルステン・ベータ、村越秀治、柴田幹大) +鈴木大晴と炭竈享司は同等に貢献した筆頭著者。
- 掲載誌
- Science Advances
- DOI
- 10.1126/sciadv.aeg0958
- URL
- https://www.science.org/doi/10.1126/sciadv.aeg0958